Initiation à la phytosociologie
Important
Ce texte est une reprise du cours, sous forme de diaporama, réalisé par le CBNFC en 2009 et intitulé Initiation à la phytosociologie : formationphy2009_ecran.pdf. Il a été complété par diverses sources citées à la fin de ce document.
Sommaire
- 1. Notion de groupement végétal
- 2. Méthodes d’études de la végétation
- 3. Aperçu historique sur la phytosociologie
- 4. Concepts de base
- 5. Étape analytique - le relevé phytosociologique
- 6. Première étape synthétique - mise en évidence et interprétation des syntaxons
- 7. Deuxième étape synthétique - le synsystème
- 8. Traitement statistique des données
- 9. Bibliographie
1. Notion de groupement végétal
1.1. La formation végétale
August Grisebach (1814-1879) définit la formation végétale comme un type de végétation caractérisé par son aspect, sa physionomie et sa structure ; une prairie, une lande, une forêt. Il énonce trois concepts-clés :
- les végétaux doivent être classés en fonction de leurs formes adaptatives, plus que pour leur relation phylogénétique ;
- les végétaux doivent être considérés comme des parties d’une société végétale ;
- le climat est le facteur déterminant pour la constitution des communautés végétales.
Des typologies des formations végétales ont ensuite été proposées par Brockmann-Jerosch et Rübel (1912), Diels (1910), Ellenberg et Mueller-Dombois (1967).
Salvador Rivas-Martinez (1996) définit la formation végétale comme un ensemble de communautés végétales propre à un grand territoire, délimité par la physionomie résultant de l’organisation spatiale conférée par les formes biologiques des plantes dominantes.
| Formation | Définition opérationnelle |
|---|---|
| Forêt | Formations arborescentes ≥ 7 m de haut (parfois 5 m en contexte alluvial), couronnes contiguës ou à vides réduits |
| Fourré | Formations arbustives de 0,5 à 7 m, dominées par les nanophanérophytes |
| Fourré nain | Formations arbustives < 0,5 m, dominées par les chaméphytes frutescents (sauf tourbières à sphaignes) |
| Végétation herbacée | Plantes vasculaires non ou à peine ligneuses, dressées par elles-mêmes (y compris rampantes) |
| Végétation aquatique | Formations inondées quasi en permanence, espèces incapables de se dresser hors de l’eau (≠ végétations amphibies dimorphiques) |
| Végétation bryo-lichénique | Dominée par les bryophytes et lichens |
| (Source Delassus, 2015) |
1.2. Le groupement végétal ou la communauté végétale
Définition
Le groupement végétal (ou communauté végétale) est un ensemble d’organismes végétaux vivant rassemblés dans une portion délimitée de l’espace.
La phytosociologie est l’une des disciplines dont l’objet est l’étude des groupements végétaux, à travers la notion d’association végétale.
1.3. Le continuum
Le concept de continuum pose pour principe que chaque espèce présente une réponse individuelle aux gradients environnementaux :
- les communautés végétales présentent alors une composition floristique qui varie très progressivement de l’une à l’autre, rendant difficile leur individualisation réciproque ;
- ce concept, inspiré par Gleason et développé aux États-Unis par Curtis et Mac Intosh, remet en cause l’association végétale telle que définie par la phytosociologie.
La phytosociologie, au contraire, est fondée sur la recherche de discontinuités.
La notion d’ensemble flous, en phytosociologie vient répondre à cette problématique du continuum.
L'ensemble flou
- Foucault (1980) introduit pour les individus d’association la notion d’ensembles flous : « dans tout ensemble flou, même s’il passe de façon presque continue à un ensemble contigu, on peut délimiter un sous-ensemble homogène optimal et c’est dans ce sous-ensemble qu’on doit effectuer le relevé » ;
- Dupouey (1988) souligne l’intérêt de cette notion en phytosociologie forestière et montre qu’elle apporte un élément de solution au problème du continuum : elle permet de distinguer des types de végétation tout en intégrant les variations continues (relevés typiques vs relevés intermédiaires ou hybrides).
2. Méthodes d’études de la végétation
2.1. La phytogéographie
La phytogéographie étudie la répartition des végétaux et des communautés végétales en analysant les causes. Elle est l’ancêtre de la phytosociologie.
2.2. La phytosociologie
La phytosociologie est l’étude des associations végétales (au sens retenu dans ce cours).
2.3. La phytoécologie
Initiée par les travaux de Louis Emberger (1897-1969), développée par Philippe Daget (1964), Michel Godron (1967), Michel Gounot (1969), la phytoécologie :
- introduit le concept de groupes écologiques statistiques, à partir de la notion de groupes socioécologiques (Paul Duvigneaud, 1946) ;
- se concentre sur l’explication du déterminisme écologique de la végétation.
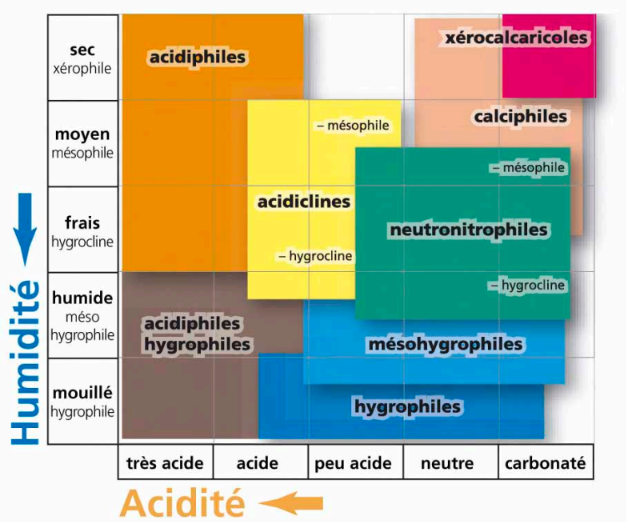
C’est une approche réductionniste de la végétation, par opposition à l’approche holistique :
- la végétation est étudiée par le biais du taxon ;
- on établit le profil écologique de chaque taxon relativement aux données mésologiques mesurées (pH, taux de saturation, granulométrie…) ;
- on définit des groupes socioécologiques rassemblant des espèces présentant des profils semblables ;
- les communautés végétales sont conçues comme des assemblages de groupes écologiques.
Applications :
- l’étude des stations forestières est une application de la phytoécologie (groupes écologiques d’espèces indicatrices) ;
- la modélisation de l’évolution de la végétation consécutive au changement climatique (D. Marage, J.-P. Gégout) ;
- en typologie forestière, les groupes d’espèces indicatrices servent couramment à estimer le régime hydrique de la station et le niveau trophique du sol.
3. Aperçu historique sur la phytosociologie
3.1. Les racines phytogéographiques
La phytosociologie prend racine dans la phytogéographie :
- Alexandre de Humboldt (1769-1859) - rôle fondateur : il définit les notions d’étages de végétation, de zonation, de forme de croissance des végétaux et préfigure la notion de formation ;
- August Grisebach (1814-1879) - propose le concept de formation végétale et préfigure la notion d’association ;
- Henri Lecoq (1802-1871), auteur de « la géographie botanique de l’Europe et en particulier sur la végétation du plateau central de la France » ;
- Charles Flahaut (1852-1935) - Lecoq et Flahaut sont considérés comme des précurseurs de la phytosociologie.
Né à Bailleul, Charles Flahaut :
- fonde l’Institut de Botanique de Montpellier ;
- initie les premières cartographies synthétiques de la végétation ;
- ébauche le concept d’association végétale ;
- forme Louis Emberger et Josias Braun-Blanquet.
3.2. La naissance de la phytosociologie
La phytosociologie naît avec les travaux du Zurichois Josias Braun-Blanquet (1884-1980), notamment sa thèse portant sur l’étude des associations végétales des Cévennes, et de ses échanges avec le phytogéographe montpelliérain Jules Pavillard (1868-1961), concrétisés par la publication en 1922 du « Vocabulaire de Sociologie Végétale ».
École zuricho-montpelliéraine et sigmatisme
La méthode est alors qualifiée de phytosociologie zuricho-montpelliéraine ou de sigmatiste, relativement à l’école SIGMA (Station Internationale de Géobotanique Méditerranéenne et Alpine), fondée à Montpellier par J. Braun-Blanquet.
3.3. Les écoles
L’école parisienne, influencée par Pierre Allorge (1891-1944), se rapproche de la phytogéographie classique ; nombreuses monographies : le Vexin (Allorge, 1922), les Vosges (Malcuit, 1928), la Brenne (Rallet, 1935), le Perche (Lemée, 1937), le Valois (Jovet, 1949).
L’école « ethnophytosociologique » de Georges Kuhnholtz-Lordat, essentiellement appliquée, fait une grande place à la dynamique de la végétation.
L’école sigmatiste attire de nombreux phytosociologues français, comme Marcel Guinochet (1909-1997), et étrangers, comme Reinhold Tüxen (1899-1980) :
- Guinochet a eu une réflexion épistémologique poussée sur la phytosociologie ;
- Tüxen a précisé et codifié les principes de la phytosociologie ;
- à leur tour, ils forment d’autres élèves : Salvador Rivas Goday (1905-1981), Salvador Rivas-Martinez, Jean-Marie Géhu.
3.4. Les développements récents
La symphytosociologie (phytosociologie paysagère) émerge en 1975 sous l’influence de Reinhold Tüxen, Jean-Marie Géhu, Salvador Rivas-Martinez, Otto Hegg et Claude Béguin :
- objectif : analyser et définir le paysage au travers des associations végétales ;
- il s’agit d’une phytosociologie intégrée : les différentes unités sont définies en intégrant les unités de rangs inférieurs, à l’image d’une poupée russe, depuis l’association jusqu’à l’unité de paysage, la catena (géosigmassociation).
L’école synusiale intégrée naît dans les années 1980 à partir des travaux de François Gillet, Bruno de Foucault et Philippe Julve, en s’inspirant notamment des travaux de Theodor Lippmaa (1892-1943), de J. Braun-Blanquet et de R. Tüxen :
- le concept de base repose sur la définition des synusies végétales, par opposition à la phytosociologie classique qui repose sur la définition de groupements à l’échelle de la phytocénose ;
- en phytosociologie synusiale, les phytocénoses sont décrites par intégration des synusies ;
- les niveaux supérieurs (tesela, catena) sont également décrits par intégrations successives des niveaux inférieurs.
Pour avoir plus de détail sur l’histoire de la phytosociologie, se référer à l’article de Géhu à l’occasion de centenaire de la botanique (2010).
4. Concepts de base
4.1. Cadre conceptuel
- Ce cours relève de la phytosociologie sigmatiste ;
- Il reprend de synthèse du CBNFC en 2009 dans son diaporama intitulé Initiation à la phytosociologie.
4.2. La phytosociologie
Le terme est créé par Józef Paczoski (1864-1942), botaniste polonais, à la fin du XIXᵉ siècle, pour désigner la science qui étudie la genèse, la vie, le développement et la distribution des formations végétales ; il prend son sens actuel suite aux travaux de J. Braun-Blanquet.
- C’est en premier lieu une taxonomie, donc une morphologie : un discours sur des formes ➡️ en botanique, les formes étudiées sont des plantes ;
- en phytosociologie sigmatiste, les formes étudiées sont des individus d’association, correspondant approximativement à des phytocénoses ;
- c’est aussi une physique, dans le sens où elle possède une loi : le synsystème ;
- la mise en œuvre de la méthode est classiquement décomposée en deux étapes : analytique et synthétique.
4.3. L’association végétale
L'unité conceptuelle de base
L’association végétale est l’unité conceptuelle de base de la phytosociologie. Plusieurs définitions ont été proposées au cours du temps par les auteurs :
- Flahault & Schröter (1910) : « Une association est un groupement végétal de composition floristique déterminée, présentant une physionomie uniforme et croissant dans des conditions stationnelles uniformes également. »
- J. Pavillard (1927) : « je ne crois pas à la possibilité de définir l’association, pas plus que l’espèce » ;
- M. Guinochet (1973) : « une association végétale est une combinaison originale d’espèces dont certaines, dites caractéristiques, lui sont plus particulièrement liées, les autres étant qualifiées de compagnes ».
La définition retenue dans ce cours (adaptée de F. Gillet et al., 1991) :
Définition de l'association (adaptée de F. Gillet et al., 1991)
Une association est une unité abstraite fondamentale de la classification hiérarchique des individus d’association, constituée de un ou plusieurs syntaxons élémentaires partageant significativement plus de caractères communs que de caractères différentiels. Les caractères floristiques sont prioritaires sur les propriétés structurelles, chorologiques, historiques et écologiques.
4.4. Le relevé phytosociologique ≠ tout relevé de végétation
Distinction fondamentale
Tous les relevés quantifiés ou semi-quantifiés d’espèces ne constituent pas un relevé phytosociologique. Les relevés de suivi de stations d’espèces ou de mesure de gestion sont souvent réalisés dans des individus peu caractéristiques et ne respectent pas le protocole (triple homogénéité, aire minimale, période optimale) : leurs objectifs sont différents (évolution du couvert, efficacité d’une gestion, pression de la végétation sur une espèce patrimoniale, description de biotope).
Analogies et cas d’usage :
- le relevé phytosociologique est « l’équivalent, pour la végétation, de ce qu’est la part d’herbier pour la flore » : il n’est réalisé que dans des individus bien développés (saturés en espèces) ;
- un relevé est réalisé : en cas de doute sur la détermination d’un syntaxon ; pour créer une référence attestant la présence de syntaxons sur un site ; pour compléter les catalogues ; pour valoriser les observations de terrain ; pour accumuler des relevés sur des végétations rares ; pour conforter la caractérisation d’un syntaxon.
4.5. Groupements fragmentaires et communautés basales
| Groupement fragmentaire | Communauté basale | |
|---|---|---|
| Cause | Manque de place : l’unité ne dispose pas de la surface suffisante (aire minimale) pour se développer normalement ; tous les taxons caractéristiques ne peuvent pas s’installer | Cortège appauvri malgré une place suffisante, à cause d’un facteur externe (généralement anthropique) qui élimine les espèces d’amplitude étroite, ou de la jeunesse du groupement (les espèces plastiques se propagent plus vite) |
| Flore | Espèces de l’association incomplètes | Seulement des espèces caractéristiques/différentielles des unités supérieures au rang de l’association |
| Devenir | Relevé non exploitable pour un inventaire des communautés | Rattachement noté BC Taxon [Syntaxon] (Taxon = le plus marquant ; Syntaxon = unité supérieure rattachée) |
| Origine du concept : Kopecky & Hejny (1974). La distinction (notée dans les caractéristiques d’échantillonnage) permet de discriminer les relevés à faible nombre d’espèces caractéristiques. |
5. Étape analytique - le relevé phytosociologique
5.1. Principes
- La mise en évidence des associations végétales s’appuie essentiellement sur leur composition floristique ;
- la première étape consiste donc à réaliser des relevés selon un plan d’échantillonnage, sur une surface homogène et représentative de l’individu d’association.
Delassus (2015) propose 5 étapes pour la saisie d’un relevé :
| Étape | Contenu |
|---|---|
| 1. Identité du relevé | Identifiant ; projet ; observateur(s) ; date ; localisation ; description floristico-écologique ; rattachement au synsystème dans la mesure du possible ; caractéristiques d’échantillonnage ; forme ; physionomie ; données stationnelles ; photographie ; transect/schémas |
| 2. Liste floristique | Exhaustive, strate par strate |
| 3. Surface, recouvrement, hauteur | Surface (m²), recouvrement total et par strate (%), hauteur par strate |
| 4. Coefficients | Abondance-dominance (obligatoire), sociabilité (optionnel), vitalité (optionnel) |
| 5. Vérification | Check-list des champs obligatoires (voir plus bas) |
5.2. Plan d’échantillonnage
Du point de vue du statisticien, l’échantillonnage devrait être réalisé au hasard sur une surface donnée. Compte tenu de la nature des objets étudiés, ce type d’échantillonnage n’est pas adapté : il aboutirait à sur-échantillonner les types de végétation les plus courants et à ignorer les types les plus rares.
On pratique généralement un échantillonnage stratifié :
- sélection à l’avance des sites présentant un éventail aussi complet et équilibré que possible des diverses situations, en fonction d’une série de critères devant être explicités ;
- toutes les informations disponibles sont mises à profit : photographie aérienne, cartes topographiques, géologiques, pédologiques, catalogues floristiques, comptes-rendus d’excursions botaniques, etc. ;
- l’échantillonnage est organisé pour obtenir un nombre de relevés à peu près équivalent pour chaque situation supposée déterminante ;
- dans la pratique, on élabore une carte d’itinéraires recoupant un maximum de situations, définis à partir des éléments disponibles.
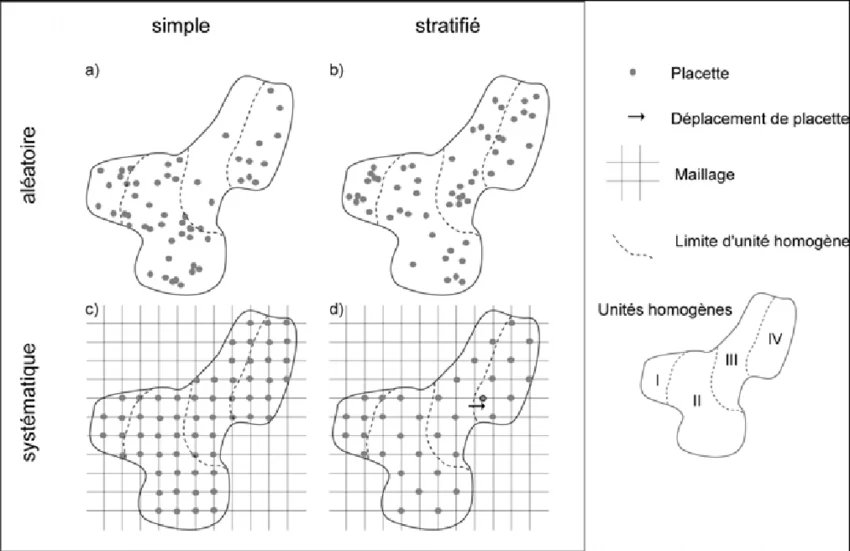 Les différentes types d’échantillonnage, a) aléatoire simple, b) aléatoire stratifié, c) systématique simple et d) systématique stratifié (Dufour & Piégay, 2004)*
Le fait unique n'a aucun intérêt
Le phytosociologue ne doit pas perdre de vue que le fait unique n’a aucun intérêt : c’est le premier critère dont il devra tenir compte lors de la mise en œuvre de son plan d’échantillonnage.
Il est également important de bien choisir les périodes de passages.
Calendrier indicatif (Géhu, 2006) :
| Type de végétation | Période optimale |
|---|---|
| Prairies | mai - juin |
| Pelouses sèches et dunaires | mars - mai |
| Forêts | avril - mai/juin |
| Prés salés | juillet - septembre |
| Ces périodes restent très variables selon les bio-écorégions et climats locaux. |
- D’après Delassus (2015), le relevé est une « photographie à un instant t » : on peut repasser pour valider une détermination, mais il est interdit de compléter la liste des espèces ou de modifier les coefficients lors du passage de validation (sinon l’information de la date perd son sens temporel et saisonnier) ;
- si la période optimale est inconnue ou en cas d’alternance de phénophases : possibilité de réaliser plusieurs relevés sur la même aire-échantillon à des dates différentes (Gillet, 2000), en conservant le plus représentatif ;
- les espèces non identifiées le jour J sont notées au genre (ex. Rubus sp.) ou la mention “doute” peut-être ajoutée.
5.3. Surface homogène et représentative
Quelques conseils pratiques (Delassus, 2015) :
Délimitation des unités de végétation homogènes :
- Repérer en premier lieu l’uniformité des couleurs et textures, la répétition d’un motif au sol, ainsi que la cohérence de la stratification verticale (« compétence visuelle ») ; puis vérifier l’homogénéité floristique et l’absence de rupture écologique ;
- Ne pas confondre la structure agrégative des espèces au sein d’un même individu d’association avec une mosaïque répétitive de types de structures juxtaposés (ex. : en tourbière à sphaignes, bombements et dépressions ; en forêt, clairières) ;
- Prendre le temps de parcourir le site dans sa globalité avant de relever ; sur un grand site, rechercher des individus suffisamment caractéristiques ; sinon, prospecter les alentours proches ;
- Éviter les relevés dans les groupements fragmentaires ou les zones de transition dynamique (prairies abandonnées, etc.) : privilégier la recherche d’individus représentatifs des deux stades dynamiques qui se succèdent ;
- En cas de doute : multiplier les relevés, quitte à écarter ensuite les moins représentatifs.
La triple homogénéité
Un individu d’association est défini sur le terrain par la règle de la triple homogénéité : homogénéité floristique (composition spécifique), physionomique (structure) et écologique (conditions stationnelles). C’est le critère opérationnel de délimitation des unités de végétation. Il s’agit d’un « ensemble flou » de végétaux. Pour le délimiter, on néglige les zones de transition et on s’assure que la surface retenue présente une forte homogénéité des facteurs liés au milieu (substrat, pente, exposition, éclairement, etc.), ainsi qu’une formation végétale homogène. La composition floristique doit rester la même dans plusieurs directions. La surface doit être suffisamment grande pour être représentative (généralement désignée comme l’aire minimale). Dans le cas contraire, on risque d’échantillonner un individu fragmentaire, non représentatif.
Localisation du relevé au sein de l’individu :
- Choisir un emplacement au centre de l’individu d’association, en évitant les marges (effet de lisière dû au continuum) et les singularités (passages d’animaux, zones hétérogènes) ;
- Le choix ne doit pas être influencé par le désir d’inclure un maximum d’espèces ou une espèce rare (un pic de diversité peut indiquer une limite avec un autre individu).
Relevés autour des espèces à forte valeur patrimoniale :
- Possible uniquement si la triple homogénéité est respectée ;
- Si l’espèce se situe à la jonction de deux individus d’association : réaliser deux relevés et expliquer la situation ;
- Si l’individu est peu caractérisé (stade dynamique intermédiaire, phase d’installation) : réaliser un autre relevé dans un individu proche écologiquement et floristiquement analogue.
5.4. Aire minimale
Le concept d’aire minimale a été défini par J. Braun-Blanquet et J. Pavillard (1928) :
Braun-Blanquet & Pavillard (1928)
« l’espace minimum (que demande un individu d’association) pour acquérir le développement auquel correspond l’ensemble spécifique normal »
Un relevé n’est considéré comme représentatif de l’individu d’association étudié que s’il est effectué sur une surface au moins supérieure à l’aire minimale.
Détermination classique : on définit l’aire minimale d’un individu d’association à partir de la courbe aire-espèces - courbe d’accroissement du nombre d’espèces en fonction de la surface, que l’on augmente par doublements successifs de placettes imbriquées ; on détermine alors l’aire minimale qualitative comme abscisse du point de courbure maximale de la courbe. Par cette technique, on repère la surface optimale du relevé pour chaque type de communauté.
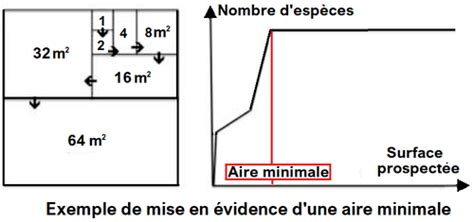
Critiques et mise à l’épreuve :
- cette approche a été critiquée par M. Gounot (1969) et Barkman (1968) ;
- F. Gillet (1998) a testé l’intérêt de la méthode sur une synusie constituant le sous-bois herbacé d’une hêtraie-chênaie-charmaie marnicole de plateau, floristiquement homogène et très recouvrante (recouvrement 95 %) :
- une courbe aire-espèces classique limitée à 32 m² permet de déterminer sans ambiguïté une aire minimale proche de 4 m² ; au-delà, le nombre d’espèces tend à se stabiliser, or les 8 espèces recensées dans cette aire minimale ne sont nullement représentatives de l’ensemble spécifique maximal ;
- une deuxième courbe effectuée sur l’échantillon complet (jusqu’à 2 048 m²) aboutit à une nouvelle aire minimale, aux alentours de 250 m², plus représentative de l’ensemble taxonomique maximal ;
- en représentant la surface en échelle logarithmique, l’accroissement du nombre d’espèces apparaît, non pas asymptotique, mais logarithmique, au moins entre 10 cm² et 2 000 m² : « l’aire minimale » déterminée graphiquement apparaît donc comme un artefact lié à un choix arbitraire de l’échelle d’investigation ;
- dans le cas étudié, l’aire minimale « absolue » (plafonnement réel de la courbe) est en fait supérieure à 2 000 m², surface largement supérieure à toutes celles habituellement considérées pour des communautés herbacées ;
- ces résultats confirment les observations de M. Gounot : « il semble plutôt que le nombre d’espèces croisse d’une manière plus ou moins linéaire en fonction du logarithme de la surface inventoriée, dans la gamme de surfaces où l’on situe généralement l’aire minimale ».
Deux méthodes de délimitation de l’aire à échantillonner peuvent être appliquées selon l’état de fragmentation de l’individu d’association :
- Relevé non fragmenté - pour des individus peu fragmentés, à large développement spatial, dont l’aire-échantillon peut se réduire à un unique quadrilatère : on relève une portion homogène de l’individu d’association, en évitant les zones de contact avec les autres individus d’association ;
- Relevé fragmenté - pour des individus fragmentés en taches plus ou moins régulières et bien délimitées, où aucune tache ne possède une surface suffisante pour atteindre l’aire minimale : on additionne les surfaces de plusieurs fragments homogènes de l’individu d’association.
Conséquence méthodologique
Il est toujours souhaitable d’exécuter un relevé sur une portion la plus grande possible d’un individu d’association, bien au-delà de l’aire minimale empirique apparente, dans les seules limites de l’homogénéité floristique, structurale et écologique nécessaire.
Valeurs empiriques habituellement retenues :
| Groupement | Aire minimale (CBNFC 2009) | **Aire minimale ** (Delassus, 2015) |
|---|---|---|
| Pelouses | 10-20 m² | 1-2 à 10 m² |
| Bas-marais / tourbière | - | 5-20 m² |
| Prairies | 20-50 m² | 16-25 m² (50 si nécessaire) |
| Mégaphorbiaie | - | 16-25 m² (50 si nécessaire) |
| Roselière / cariçaie | - | 30-50 m² voire plus |
| Ourlet linéaire | 20-50 m² (avec prairies) | 10-20 m² |
| Landes | 50-100 m² | 50-200 m² |
| Fourré | - | 50-100 m² voire 200 m² |
| Forêts | 300-1 000 m² | 300-800 m² |
Important
Une modernisation de cette méthode a été proposée par Emmanuel Catteau : Aire minimale selon Catteau 2019. A mon sens, il s’agit de la méthode la plus pertinente à utiliser aujourd’hui malgré qu’elle soit encore peu connue. Elle bénéficie ainsi d’une note part entière.
5.5. Stratification codifiée et règles d’inventaire
Codes de strates utilisés en forêt (et adaptables ailleurs)
| Code | Strate | Hauteur indicative |
|---|---|---|
| A | arborescente (arbres de 1ʳᵉ et 2ᵉ grandeurs) | > 7 m |
| a1 | arbustive supérieure (arbustes hauts, jeunes arbres) | 3 - 7 m |
| a2 | arbustive basse (arbustes bas, jeunes arbres) | 1 - 7 m (tel qu’imprimé dans le guide ; probable coquille pour 1-3 m) |
| h | herbacée (herbacées, chaméphytes, jeunes plantules ligneuses) | < 1 m |
| m | bryo-lichénique - seulement au sol (exclut épiphytes, épilithes, saprophytes) | - |
-
les jeunes ligneux en strate herbacée/arbustive peuvent être marqués « j » (juvénile). Ils peuvent être noté dans une strate à part entière ou directement dans les données associées à l’espèce.
-
les hauteurs sont des indications : les strates a1/a2 peuvent ne pas être distinguables ; les noms de strates ne présagent pas du type biologique ;
-
si la strate herbacée est bistratifiée (haute dressée / basse rampante ou rosette) : l’indiquer ; les inflorescences ne constituent pas une strate.
5.6. La liste floristique
- L’emplacement du relevé étant délimité, on procède à l’échantillonnage floristique : dresser la liste la plus complète possible des taxons (espèces, sous-espèces, variétés) représentés dans l’aire-échantillon ;
- en théorie, tous les végétaux devraient être relevés (spermaphytes, bryophytes, ptéridophytes, algues) ;
- dans la pratique, compte tenu des compétences des botanistes, seuls les spermaphytes et les ptéridophytes (rarement les bryophytes) sont relevés. Si la bryophole est relevée, les espèces relevées doivent se trouver sur le même substrat que les espèces vasculaires (en général le sol) - exclure épilithiques, épiphytiques, saprophytiques (sauf relevés dédiés) ; liste exhaustive également.
- commencer par les graminoïdes (pour ne pas les oublier) ; exhaustivité absolue (chaque taxon, même peu abondant, peut être caractéristique) ;
- nomenclature = utiliser le dernier TAXREF en vigueur ;
- les espèces dont l’appartenance à l’individu d’association est douteuse peuvent être ajoutées à la liste du relevé et mentionnées comme telles ; elles seront ignorées dans les traitements ultérieurs, au moins dans un premier temps.
5.7. Les indices d’abondance-dominance et d’agrégation
Chaque idiotaxon élémentaire est affecté d’un indice semi-quantitatif, le coefficient d’abondance-dominance.
D’autres indices peuvent être ajoutés :
- d’un indice d’agrégation, le coefficient de sociabilité ;
- des indices de vitalité-fertilité,
- Coefficient phénologique.
L’indice d’abondance-dominance est une estimation globale de la densité (nombre d’individus, ou abondance) et du taux de recouvrement (projection verticale des parties aériennes des végétaux, ou dominance) des taxons de l’individu d’association dans l’aire-échantillon :
| Classe | Signification |
|---|---|
| i | un individu (facultatif) |
| r | Moins d’une dizaine d’individu, recouvrement < 1 % (facultatif) |
| + | éléments peu ou très peu abondants, recouvrement inférieur à 5 % de la surface |
| 1 | recouvrement inférieur à 5 % de la surface |
| 2 | recouvrement entre 5 à 25 % de la surface. |
| 3 | recouvrement compris entre 25 et 50 % de la surface, abondance quelconque |
| 4 | recouvrement compris entre 50 et 75 % de la surface, abondance quelconque |
| 5 | recouvrement supérieur à 75 % de la surface, abondance quelconque |
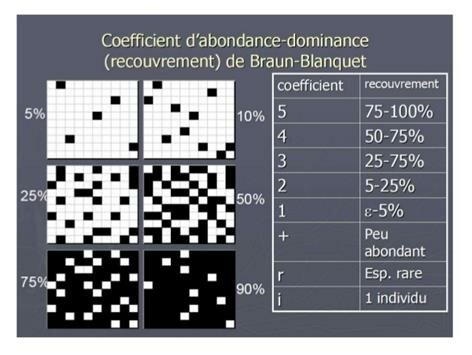 (Source : Francius, 2019)
Certains auteurs (Barkman et al., 1964 ; Westhoff et Van Der Maarel, 1978 ; Theurillat, 1992) proposent trois subdivisions pour l’indice 2 :
- 2m : éléments très abondants, recouvrement inférieur à 5 % ;
- 2a : recouvrement compris entre 5 et 12,5 %, abondance quelconque ;
- 2b : recouvrement compris entre 12,5 et 25 %, abondance quelconque.
L’indice d’agrégation (ou de sociabilité) est une estimation globale du mode de répartition spatiale et du degré de dispersion des espèces dans l’aire-échantillon. Il améliore sensiblement la lisibilité d’un relevé ou d’un tableau et présente un intérêt informatif certain sur la physionomie et la structure horizontale de la strate, même si ces indications sont rarement exploitées et mises en valeur :
| Classe | Signification |
|---|---|
| 1 | éléments répartis de façon ponctuelle ou très diluée (pieds isolés) |
| 2 | éléments formant des peuplements ouverts, très fragmentés en petites taches à contours souvent diffus (touffes, bouquets) |
| 3 | éléments formant des peuplements fermés mais fragmentés en petits îlots (nappes, bosquets) |
| 4 | éléments formant plusieurs peuplements fermés, souvent anastomosés, à contours nets (réseaux) |
| 5 | éléments formant un seul peuplement dense |
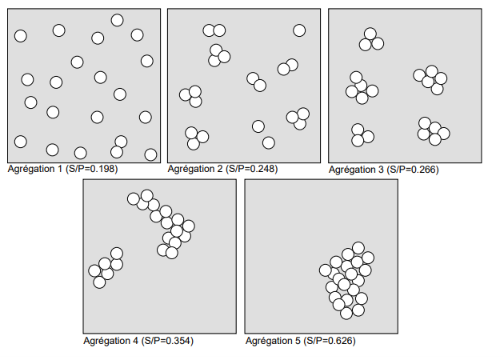 | |
| (Source : Gillet, 2000) |
5.8. Recouvrement, hauteur, données stationnelles standardisées
Recouvrement (obligatoire) :
- total de la végétation = projection au sol des organes vivants, en % de la surface du relevé ; les algues et la litière sont exclues ;
- dans les végétations ouvertes (fissures), le recouvrement est estimé sur la surface des fissures (hors roche) ;
- par strate si stratification : A, a1, a2, h, m et w (strate algale).
Recouvrement de la litière (optionnel) : % - concerne les horizons OL et OF sans distinction.
**Recouvrement du sol nu et de la roche (optionnel)
Hauteur de la végétation (obligatoire par strate) :
- hauteur modale des organes végétatifs (inflorescences exclues pour la moyenne) ; hauteur maximale possible (inflorescences incluses pour la strate herbacée) ;
- strate herbacée bistratifiée → H moy haute + H moy basse ; unistratifiée → valeurs identiques ;
- unités : m (strates arborée et arbustive), cm (herbacée, bryo-lichénique) ;
| Rubrique | Statut | Contenu standardisé |
|---|---|---|
| Identification | obligatoire | numéro du relevé |
| Observateur(s) | obligatoire | Tous les participants au relevé |
| Date | obligatoire | date selon le format jour/mois/année ou année-mois-jour |
| Surface du relevé | obligatoire | Surface relevé au final (prévoir un champs pour préciser si le relevé est fragmenté) |
| Localisation | obligatoire | Coordonnées GPS suffisent, mais des champs peuvent être ajouté pour préciser (pays, département, commune, lieu-dit). Utiliser le SRC Lambert 93 ou WGS 84. |
| Altitude | recommandé | mètres (GPS ou courbes IGN 1/25 000) |
| Topographie | optionnel | plat (< 1°), pentu (> 1°), dépression (ouverte/fermée), escarpement (> 45°), replat, sommet arrondi (butte, crête, croupe), sommet vif, versant (haut/mi/bas), talus |
| Pente | recommandé | en degrés (bornes 1, 6, 27, 45, 75, 90) + drainage externe associé |
| Exposition | recommandé | orientation générale ; « indifférente » si plat sans obstacle |
| Luminosité | optionnel | lumière / mi-ombre / ombre (au niveau de la canopée) |
| Humidité du substrat | recommandé | 7 classes + suintement, chacune définie par 4 critères (végétation, eau, sol, topographie) : toujours immergé, périodiquement submergé, humide, assez humide, bien drainé, assez sec, sec ; + niveau d’eau en cm |
| Roche mère | recommandé | clé en 3 étapes : sédimentaire (fossiles) / métamorphique (structure orientée) / éruptive ; source : BRGM (infoterre) |
| Type de sol | optionnel | Référentiel pédologique 2008 (Baize et al.) : squelettiques (lithosol, régosol), peu évolués (rankosol, arénosol, pélosol, fluviosol, colluviosol), carbonatés (rendosol, rendisol, calcosol, calcisol), brunisols (saturé, mésosaturé, oligosaturé), alocrisol, luvisols (néo, typique, dégradé), podzosols (typique, ocrique, leptique, sec, hydromorphe), hygromorphes (planosol, rédoxisol, réductisol, histosol) |
| Texture du sol en surface | optionnel | triangle des textures (7 classes) + éléments grossiers (graveleux, caillouteux, pierreux, organique) ; diagnostic tactile (méthode tarière, Dupont et al. 1992 : estimation sable/argile/limon) + test du boudin et de l’anneau (> ou < 10 % / 30 % d’argile) ; pièges : MO humifiée → impression limoneuse, limons très fins selon l’humidité |
| Salinité | optionnel | salé / saumâtre / ni salé ni saumâtre / inconnu (évalué via la flore ou le contexte) |
| Humus | optionnel (recommandé en forêt) | mull / moder / mor / tourbe (+ clé détaillée, cf. annexes) |
| Maturité de la communauté | optionnel | juvénile / mature / sénescent (état des espèces structurantes, saturation du cortège) - permet d’éviter les individus transitoires |
| Gestion observée | recommandé | aucune, culture, production de bois, pâture, fauche, pâture+fauche, production fruitière/maraîchère, promenade/tourisme, pisciculture, faucardage, curage, prélèvement de sol, gestion inconnue |
| Actions biotiques | optionnel | espèces invasives, abroutissement (lapin, ragondin, grands mammifères), galeries, etc. |
| Informations écologiques | optionnel | - substrat géologique, pédologique ou biologique, microclimat, action de l’homme, etc. ; - végétations en contact dans un contexte écologique différent (topographie, géologie) ; noter les identifiants des relevés associés. |
| Informations dynamiques | optionnel | - Symphytosociologie, description de dynamique, présence d’espèces marquant la transition ; - Végétations en contact dans les mêmes conditions écologiques mais précédant/succédant (dynamique) - noter les identifiants des relevés associés. |
| Commentaires | optionnel | texte libre |
| Description floristico-écologique (recommandée à obligatoire selon les auteurs) - format imposé : formation végétale + structure verticale/horizontale + facteur(s) écologique(s) déterminant(s) + 2 ou 3 espèces représentatives. Ex. : « Prairie rase et irrégulière des pentes calcaires pâturées à Cynosurus cristatus et Sanguisorba minor » ; pour les ligneux, utiliser le genre de l’espèce dominante : « Saulaie haute et dense des hauts de vallées alluviales à Salix atrocinerea, Tamus communis et Hedera helix ». |
Photographie 📸(recommandée) : toujours, pour faciliter le rattachement et sa validation par un tiers.
Transect, schémas, végétations de contact (recommandé) : replacer l’individu dans son contexte.
6. Première étape synthétique - mise en évidence et interprétation des syntaxons
6.1. Principes
Avant d’aller plus loin dans les analyses de données, il faut noter que le rattachement à un syntaxon existant peut se faire par simple comparaison à la bibliographie, via les combinaisons caractéristiques ou les descritpions. Dans tous les cas, on recherche successivement les caractéristiques de la classe → ordre → alliance → association :
- Classe : critères d’architecture de la végétation (formations végétales), écologie et composition floristique générale ;
- Niveaux inférieurs : composition floristique, espèces caractéristiques des différents niveaux ;
- Association : combinaison caractéristique - « il faut qu’un certain nombre des espèces de la combinaison caractéristique soient présentes, mais pas forcément toutes en même temps » (science statistique).
Dans une approche plus statistique, on cherche à analyser nos données nécessitant un travail avec les tableaux bruts produit lors de la phase d’inventaire. Les relevés deviennent une variable à analyser avec comme paramètre les espèces.
- La comparaison d’un lot quelconque de relevés vise à établir une partition en un certain nombre d’ensembles homogènes (à l’intérieur desquels les relevés se ressemblent plus entre eux qu’ils ne ressemblent aux autres), correspondant à autant de syntaxons élémentaires (en abrégé SyE) ;
- la comparaison des relevés peut se fait, dans un premier temps, exclusivement en présence-absence, sans tenir compte de l’abondance-dominance ni de l’agrégation des espèces ;
- ces dernières informations ne seront utilisées qu’ultérieurement, dans la définition des faciès et/ou pour la caractérisation biologique et écologique des syntaxons élémentaires ;
- toutes les espèces possèdent a priori la même valeur dans la comparaison des relevés : aucune importance particulière ne doit être attachée subjectivement à telle espèce en fonction des connaissances préalables (de nature écologique ou autre) du phytosociologue ;
- les données écologiques associées aux relevés sont totalement ignorées à ce stade, afin de pouvoir être corrélées ultérieurement avec les données floristiques ;
- un seul critère universel de ressemblance sert à la classification des relevés : la présence ou l’absence commune de taxons.
6.2. Le syntaxon élémentaire (SyE)
Pour servir à la définition d’un syntaxon élémentaire, un ensemble de relevés doit satisfaire deux conditions complémentaires et obligatoires : être homogène et posséder des espèces différentielles. La première est une condition de symétrie interne, la deuxième de dissymétrie.
De Foucault (1986)
« le syntaxon élémentaire se définit absolument par ses espèces constantes et relativement par ses espèces différentielles »
- Homogénéité endogène (intrinsèque, absolue) : ne fait référence qu’aux relevés d’un ensemble, et se traduit par l’existence d’espèces constantes - une espèce constante est définie par un haut niveau de fréquence relative (présente dans plus de 60 % des relevés de l’ensemble). L’homogénéité peut également être appréciée relativement à un échantillon plus ou moins grand et hétérogène de relevés ;
- espèces différentielles : une espèce qui, par sa présence (différentielle positive) ou son absence (différentielle négative), permet de différencier un ensemble de relevés d’un autre. La présence d’une seule espèce différentielle, même constante et dominante, ne peut être considérée comme suffisante : un SyE doit posséder plusieurs espèces différentielles positives et/ou négatives, dont au moins une constante, par rapport à chacun des autres ensembles homogènes de relevés ;
- chaque SyE est décrit par un tableau homogène doué d’une symétrie interne statistique.
6.3. Traitements des données
Il existe deux grands types de méthodes :
- la technique du tri manuel des tableaux phytosociologiques, réalisable sur un outil tableur (Libre office calc, Excel etc…) ;
- les techniques d’analyses multivariées, réalisable avec des outils de traitements statistiques (R, PhytoCohortis, Juice etc…).
Tri manuel - démarche :
- partir d’un tableau brut dans lequel on essaie de rapprocher les espèces qui « marchent ensemble » ;
- rechercher également celles qui s’excluent ;
- il est recommandé de travailler sur un tableau « différentiel » réduit, dans lequel on a éliminé les taxons trop abondants ou trop rares ;
- rapprocher les espèces et les relevés par permutation des lignes et des colonnes ;
- affiner le tableau en procédant de manière récurrente ;
- ré-intégrer l’ensemble des taxons.
6.4. Exemple de tableau : prairie mésophile, 30 relevés (diapositive p. 66)
Tableau phytosociologique de prairie mésophile (30 relevés), présenté en première approche de l’étape synthétique : il regroupe des espèces de la combinaison caractéristique, de l’Arrhenatherion elatioris, du Centaureo-Arrhenatherenion (différentielles), du Triseto flavescentis-Polygonion bistortae, des Arrhenatheretalia elatioris et des Trifolio repentis-Phleetalia pratensis. Chaque colonne est un relevé ; la dernière colonne (Cl.) indique la classe de fréquence de l’espèce dans le tableau (de I à V). Les coefficients sont les indices d’abondance-dominance ; « . » = absence dans le relevé.
Tableau large
Ce tableau comporte 30 colonnes de relevés : en lecture, faire défiler horizontalement.
| Taxon | 1 | 2 | 3 | 4 | 5 | 6 | 7 | 8 | 9 | 10 | 11 | 12 | 13 | 14 | 15 | 16 | 17 | 18 | 19 | 20 | 21 | 22 | 23 | 24 | 25 | 26 | 27 | 28 | 29 | 30 | Cl. |
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| % recouvr. h1 | 100 | 99 | 100 | 100 | 100 | 100 | 100 | 100 | 100 | 100 | 100 | 100 | 100 | 100 | 100 | 100 | 100 | 100 | 98 | 99 | 98 | 98 | 93 | 100 | 100 | 100 | 100 | 99 | 100 | 100 | |
| haut. moy. h1 | 0,4 | 0,3 | 0,5 | 0,9 | 0,5 | 0,4 | 0,5 | 0,5 | 0,4 | 0,5 | 0,4 | 0,5 | 0,5 | 0,5 | 0,7 | 0,5 | 0,5 | 0,4 | 0,1 | 0,07 | 0,4 | 0,4 | 0,6 | 0,4 | 0,7 | 0,4 | 0,9 | 0,4 | 0,6 | 0,6 | |
| nb taxons | 30 | 26 | 25 | 29 | 28 | 25 | 22 | 27 | 22 | 29 | 26 | 32 | 17 | 20 | 25 | 22 | 25 | 17 | 29 | 34 | 36 | 22 | 32 | 29 | 37 | 35 | 29 | 32 | 28 | 40 | |
| Combinaison caractéristique | |||||||||||||||||||||||||||||||
| Bromus hordeaceus subsp. hordeaceus | 1 | + | 2 | 3 | + | 2 | . | 2 | + | . | + | 1 | 2 | 4 | 3 | 2 | 2 | 2 | 2 | 1 | 4 | 2 | 2 | + | + | + | 1 | 1 | 1 | + | V |
| Poa trivialis subsp. trivialis | . | . | 1 | 2 | + | . | 3 | 4 | 3 | 3 | 4 | 4 | 5 | 3 | 2 | 3 | 4 | 4 | 2 | 2 | 2 | 4 | 4 | 3 | 3 | 3 | 2 | 2 | 4 | 3 | V |
| Heracleum sphondylium subsp. sphondylium | 2 | 1 | + | 1 | 2 | 1 | . | + | + | 1 | 2 | 2 | + | 1 | 2 | . | . | + | 2 | 2 | 1 | + | 2 | 1 | 1 | + | 2 | . | + | + | V |
| Anthriscus sylvestris | 1 | 2 | . | . | 4 | 3 | . | . | . | 1 | + | + | . | 2 | + | + | r | 3 | . | . | + | . | 1 | 3 | . | . | 1 | r | . | 1 | III |
| Espèces de l’Arrhenatherion elatioris | |||||||||||||||||||||||||||||||
| Holcus lanatus | 2 | 1 | 2 | 4 | 1 | 2 | 3 | 2 | 2 | 2 | 1 | 2 | 2 | + | 2 | 1 | + | . | 4 | 3 | . | . | 2 | . | 3 | 2 | 2 | . | 2 | 3 | V |
| Crepis biennis | 1 | + | . | 1 | . | . | . | 1 | . | . | . | + | + | 2 | 1 | 2 | + | . | 2 | 2 | . | . | 1 | . | 1 | 2 | 2 | 2 | 2 | 2 | IV |
| Rumex obtusifolius subsp. obtusifolius | 1 | . | + | + | + | . | + | . | + | 1 | . | + | 1 | . | . | + | . | + | + | . | . | 1 | . | . | + | . | . | . | . | . | III |
| Centaurea jacea | 1 | 2 | + | + | + | 1 | . | . | . | 1 | . | . | . | . | . | . | . | . | . | + | . | . | . | . | 2 | . | . | . | . | . | II |
| Leucanthemum vulgare | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | + | 1 | . | . | . | . | + | 1 | . | + | . | . | I |
| Tragopogon pratensis | . | . | . | . | . | . | . | . | . | . | . | . | . | . | + | . | . | . | . | . | . | . | + | . | . | + | . | 2 | . | + | I |
| Lolium multiflorum | . | . | . | . | . | . | 2 | 1 | . | . | 1 | 1 | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | I |
| Tragopogon pratensis subsp. orientalis | . | . | . | + | . | . | . | . | . | . | . | . | . | . | . | . | . | . | 1 | 2 | . | . | . | . | + | . | . | . | . | . | I |
| Silene vulgaris subsp. vulgaris | . | . | . | . | . | . | . | . | . | . | . | + | . | . | . | . | . | . | . | . | . | . | . | . | . | + | . | . | . | + | I |
| Colchicum autumnale | . | . | . | . | . | . | . | + | . | . | . | . | . | + | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | I |
| Espèces du Centaureo - Arrhenatherenion (dif.) | |||||||||||||||||||||||||||||||
| Medicago lupulina subsp. lupulina | . | 1 | + | . | + | . | . | . | . | . | . | + | . | . | + | . | . | . | . | . | . | . | . | . | . | 2 | . | 2 | + | . | II |
| Arrhenatherum elatius subsp. elatius | . | . | . | . | . | . | . | 1 | . | . | . | 1 | . | . | . | . | . | . | . | 1 | . | . | . | . | . | + | 3 | . | 1 | + | II |
| Knautia arvensis | . | . | . | . | . | . | . | . | . | . | . | + | . | . | . | . | . | . | . | . | . | . | . | . | . | 2 | + | . | 2 | . | I |
| Rhinanthus alectorolophus subsp. alectorolop | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | 2 | 1 | . | . | I |
| Avenula pubescens | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | + | . | . | + | . | . | . | . | . | 1 | 1 | I |
| Sanguisorba minor | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | 2 | . | . | + | . | I |
| Lotus corniculatus subsp. corniculatus | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | + | . | . | + | . | I |
| Espèces du Triseto flavescentis - Polygonion bistor | |||||||||||||||||||||||||||||||
| Trisetum flavescens subsp. flavescens | . | . | . | . | + | + | . | + | . | . | + | + | . | . | . | 2 | . | . | . | 2 | + | . | 1 | 3 | 2 | . | + | . | . | 2 | III |
| Geranium sylvaticum | . | . | . | . | + | . | . | . | . | . | . | . | . | + | . | . | . | . | . | . | . | . | + | . | . | . | + | . | . | 2 | I |
| Polygonum bistorta (dif.) | 1 | 1 | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | r | + | . | . | . | . | . | I |
| Espèces des Arrhenatheretalia elatioris | |||||||||||||||||||||||||||||||
| Trifolium pratense subsp. pratense | 2 | 2 | 2 | 1 | 2 | 2 | 1 | + | 1 | 2 | 1 | 1 | 1 | 2 | 2 | 2 | 2 | . | + | 2 | 1 | 1 | 2 | 1 | 1 | 2 | 2 | 3 | 2 | 2 | V |
| Rumex acetosa subsp. acetosa | 1 | 2 | 2 | 2 | 1 | 2 | 2 | + | + | 2 | 1 | . | 1 | 1 | 1 | 1 | 1 | 1 | 2 | 2 | + | 2 | 2 | 2 | 2 | 1 | 2 | 2 | . | 2 | V |
| Dactylis glomerata subsp. glomerata | . | . | . | 1 | 1 | . | . | 2 | . | 1 | 2 | . | 2 | + | 1 | 2 | 2 | 1 | 2 | 2 | 2 | 1 | 2 | 2 | 2 | 2 | 2 | . | 2 | 1 | IV |
| Achillea millefolium | . | . | . | . | . | . | . | . | . | 1 | . | . | . | . | + | . | + | + | . | + | 1 | . | + | + | + | 2 | + | 2 | . | + | III |
| Festuca pratensis | . | . | . | . | . | . | . | 2 | 1 | . | 2 | 2 | . | . | . | . | 1 | . | . | 1 | . | + | + | . | + | 1 | . | + | + | . | II |
| Phleum pratense subsp. pratense | . | . | . | + | . | . | . | . | 2 | . | 2 | 3 | . | . | . | . | . | . | 3 | . | . | 2 | . | . | 1 | . | 2 | . | . | . | II |
| Poa pratensis | . | 3 | 1 | + | + | + | . | . | . | . | + | + | . | . | . | . | . | . | . | . | + | . | . | . | . | . | . | . | . | . | II |
| Vicia sepium | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | 1 | . | . | + | r | . | . | . | . | . | + | I |
| Stellaria graminea | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | + | . | . | . | . | . | . | . | + | . | . | + | I |
| Espèces des Trifolio repentis - Phleetalia pratensis | |||||||||||||||||||||||||||||||
| Cynosurus cristatus | . | . | . | . | . | . | + | . | . | . | . | . | . | . | . | . | . | . | + | 2 | 1 | 1 | + | 2 | 1 | . | . | . | . | . | II |
| Alchemilla monticola | . | . | . | 1 | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | . | + | 1 | + | 1 | + | . | . | . | . | . | I |
6.5. Les propriétés statistiques d’un tableau phytosociologique homotone
Chacun des tableaux homotones issus du tri manuel ou numérique des relevés présente des propriétés statistiques particulières. Pour qu’un tableau puisse être considéré comme homotone (sensu lato), il suffit qu’il satisfasse à des conditions d’homogénéité relative (présence d’espèces constantes et différentielles).
Indice de similarité de Jaccard - l’homogénéité endogène d’un syntaxon élémentaire peut être testée à l’aide du coefficient de communauté de Jaccard, SJᵢⱼ, qui mesure la proportion d’espèces communes à deux relevés i et j par rapport au total des espèces qu’ils contiennent ensemble :
- a = nombre d’espèces communes au relevé i et au relevé j ;
- b = nombre d’espèces présentes seulement dans le relevé i ;
- c = nombre d’espèces présentes seulement dans le relevé j ;
- SJᵢⱼ = a / (a + b + c)
Seuil d'homotonité
On peut considérer que dans un tableau homotone, la valeur minimum des indices de Jaccard ne doit pas être inférieure à 0,1 ; dans le cas contraire, le SyE doit être considéré comme provisoire.
**Exemple - deux relevés i et j d’une prairie mésophile (présence/absence et coefficients) :
| Espèce | i | j |
|---|---|---|
| Colchicum autumnale | 1 | + |
| Crepis biennis | 1 | 1 |
| Cynosurus cristatus | 2 | 1 |
| Festuca pratensis | 2 | 1 |
| Leucanthemum vulgare | 1 | 1 |
| Tragopogon pratensis subsp. pratensis | 1 | 1 |
| Trifolium pratense subsp. pratense | 1 | 1 |
| Alchemilla monticola | + | |
| Arrhenatherum elatius subsp. elatius | 1 | |
| Carum carvi | + | |
| Centaurea jacea | 1 | |
| Cerastium fontanum subsp. vulgare | 1 | |
| Cirsium tuberosum | + | |
| Holcus lanatus | 3 | |
| Knautia arvensis | 1 | |
| Lolium perenne | 1 | |
| Pimpinella major subsp. major | + | |
| Plantago lanceolata subsp. lanceolata | + | |
| Poa trivialis subsp. trivialis | 1 | |
| Ranunculus acris subsp. friesianus | 1 | |
| Rhinanthus alectorolophus subsp. | 1 | |
| Rumex acetosa subsp. acetosa | 1 | |
| Trisetum flavescens subsp. flavescens | 1 | |
| Vicia cracca subsp. cracca | 1 | |
| Bromus erectus | 1 | 3 |
| Galium pumilum | 1 | 1 |
| Medicago lupulina subsp. lupulina | 1 | 1 |
| Ranunculus bulbosus | 1 | 1 |
| Sanguisorba minor | 1 | 1 |
| Anthyllis vulneraria | + | |
| Avenula pubescens | 1 | |
| Briza media | 1 | |
| Campanula glomerata subsp. glomerata | 1 | |
| Carex flacca subsp. flacca | + | |
| Centaurea pannonica | 1 | |
| Euphorbia flavicoma subsp. verrucosa | + | |
| Lotus corniculatus subsp. corniculatus | 1 | |
| Onobrychis viciifolia | + | |
| Phyteuma orbiculare subsp. orbiculare | + | |
| Salvia pratensis subsp. pratensis | 1 |
Pour cet exemple : a = 13, b = 11, c = 16, soit SJᵢⱼ = 13 / (13 + 11 + 16) = 0,325.
Vérification de l'exemple
Un comptage direct des valeurs du tableau (présence/absence dans les deux relevés) donne a = 12, b = 11, c = 17, soit SJᵢⱼ = 12/40 = 0,30. L’écart porte sur une espèce (présence commune comptée à 13 dans le diaporama contre 12 au relevé). La valeur annoncée dans le diaporama (SJ = 0,325) est reprise telle quelle pour la suite.
Relevé-type et relevés excentriques - le calcul de la moyenne des indices entre chaque relevé et tous les autres permet de trier les relevés afin de définir un « relevé-type » (moyenne la plus élevée) et d’écarter éventuellement les relevés les plus excentriques (moyennes les plus basses) ; ces relevés excentriques, non utilisés pour la définition des SyE, seront secondairement rattachés au SyE dont ils se rapprochent le plus.
Autres indices d’homotonité :
- le quotient de saturation Q (Tüxen et al., 1977) : rapport, exprimé en pourcentage, du nombre spécifique moyen n sur le nombre total d’espèces N (borne supérieure = 100 %) : Q = 100 n / N ;
- l’indice d’hétérogénéité H (Klement, 1941) : inverse du rapport précédent ;
- le taux d’accidentelles A : proportion d’espèces accidentelles du tableau (dépendant du nombre de relevés) ;
- l’histogramme des classes de fréquences de Raunkiaer (1934) : selon la « loi de fréquence », l’histogramme d’un tableau homotone doit présenter une forme régulière en J ou en U et satisfaire les conditions NI > NII > NIII et NIV < NV.
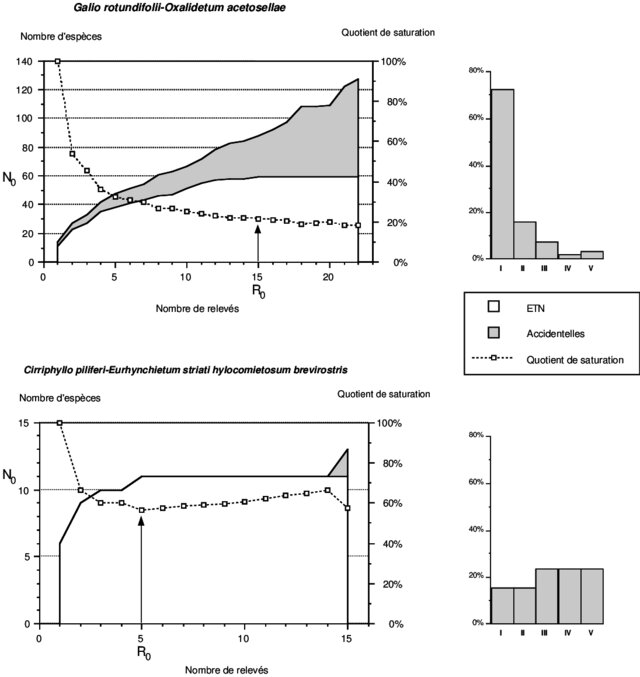
Méthode des histogramme de Raunkier (Source : Gillet, 2000)
Limites (d’après F. Gillet, 1998) :
- aucun critère quantitatif ne permet, à ce jour, de déterminer de façon objective et absolue si un tableau est suffisamment homotone pour ne représenter qu’un seul syntaxon élémentaire ;
- en revanche, ces critères peuvent être utilisés pour la détermination du nombre minimum nécessaire de relevés (valeur indicative) ainsi que pour une caractérisation statistique des syntaxons élémentaires.
Ensemble taxonomique normal (ETN) - à partir du tableau de chaque SyE, on construit un graphique présentant l’accroissement du nombre d’espèces en fonction du nombre de relevés (relevés classés par ordre croissant du nombre d’espèces par relevé), en différenciant les espèces accidentelles (fréquence relative strictement inférieure à 10 %) des autres espèces constituant l’ensemble taxonomique normal ; on peut superposer à ce graphique la courbe du quotient de saturation :
- si le nombre de relevés est suffisant, les courbes présentent une allure générale asymptotique : après une augmentation plus ou moins rapide du nombre total d’espèces, celui-ci tend à se stabiliser ;
- cette stabilisation n’est le plus souvent que relative : le nombre d’espèces accidentelles continue à croître régulièrement avec le nombre de relevés ;
- en revanche, on peut aisément mettre en évidence une saturation effective de l’ensemble taxonomique normal, correspondant à un nombre fini d’espèces N₀, à partir d’un nombre minimum de relevés R₀ ;
- ce nombre minimum de relevés dépend de l’ordre des relevés dans le tableau et doit donc être considéré comme une donnée indicative ; il est généralement compris entre 2 et 20 ;
- le quotient de saturation tend lui-même à se stabiliser à partir de ce seuil critique, bien que sa valeur continue généralement à baisser légèrement avec l’apparition de nouvelles espèces accidentelles.
Conclusions :
- un tableau phytosociologique est d’autant plus homogène et représentatif de l’ensemble taxonomique normal d’un syntaxon élémentaire que le nombre de relevés est proche de R₀ (ou légèrement supérieur) ;
- les valeurs d’homotonité des tableaux de syntaxons élémentaires dépendent dans une large mesure de paramètres intrinsèques aux types de communautés considérés (nombre d’espèces, degré de maturité) ;
- voire du mode d’échantillonnage : représentativité des aires-échantillons, homogénéité floristique et structurelle, etc.
6.6. Le déterminisme des syntaxons élémentaires - la loi phytosociologique
- Le déterminisme en phytosociologie, c’est la recherche des causes des groupements végétaux ; ce phénomène se rattache au concept de cause et d’effet ;
- la végétation est un effet et la causalité tient à l’ensemble des facteurs F écologiques, dynamiques et historiques ;
- il existe d’autres causalités secondaires : la phénologie (variation floristique temporelle en relation avec la biologie des espèces), la surface du relevé lorsqu’elle est inférieure à l’aire minimale, le hasard ;
- la plupart du temps la causalité est réduite à F, mais il faut auparavant éliminer ou limiter l’effet des facteurs secondaires :
- en complétant le relevé au cours de la saison de terrain (selon les méthodes, un relevé peut être une photographie à l’instant T, notamment en phytosociologie synusiale) ;
- en ayant la certitude d’avoir opéré sur une aire supérieure à l’aire minimale ;
- en minimisant l’effet du hasard par un nombre suffisamment important de relevés.
La loi phytosociologique - en science, la loi naît de la répétition absolue de la relation entre une cause et un effet (exemple : loi d’Ohm, V = R × I). En phytosociologie, la relation binaire entre une partie des variables écologiques et un syntaxon élémentaire est assimilable à une loi scientifique : la phytosociologie présente donc en ce sens les caractères d’une physique (De Foucault, 1984).
Définition complète du syntaxon élémentaire
Un syntaxon élémentaire, outre sa définition floristico-statistique, admet donc une définition écologique, chorologique et dynamique et présente des propriétés structurelles qui lui sont propres (physionomie, types morphologiques et biologiques dominants, phénologie).
6.7. Renseignements déduits de la composition floristique
- Valeurs écologiques des espèces (Ellenberg et al., 1991 ; Landolt, 1977) : chaque espèce est considérée comme un bioindicateur des conditions climatiques (continentalité, température, lumière) et édaphiques (pH, richesse trophique, humidité, humus, texture) ; on peut établir un spectre écologique en calculant des moyennes à partir de chaque relevé ou à partir du relevé centroïde ;
- écogrammes : représentation graphique de la variabilité écologique du SyE (ex. : dispersion des relevés de deux syntaxons élémentaires par rapport à deux valeurs écologiques de Landolt - lumière L et acidité du sol R) ;
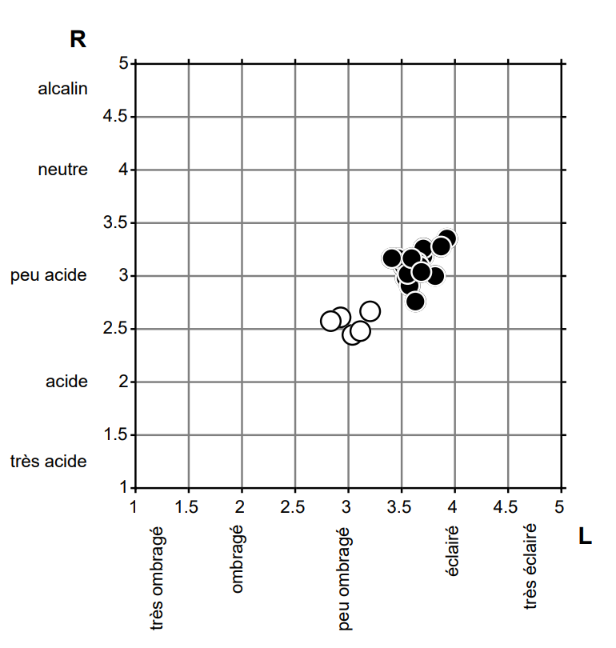 (Source Gillet, 2000)
- spectre biologique du SyE (représentation relative des types biologiques de Raunkiaer) : précieuses indications sur la structure, la physionomie et les stratégies adaptatives de la communauté ;
- valeur pastorale moyenne d’un syntaxon élémentaire herbacé : calculée à partir de la fréquence, de l’abondance-dominance moyenne et de l’indice de valeur pastorale des espèces ; directement reliée à un potentiel fourrager pour des applications agronomiques.
6.8. Corrélations avec des variables indépendantes
- Les données écologiques et structurelles associées aux relevés (hauteur de la végétation, degré d’ombrage, altitude, etc.) peuvent faire l’objet d’une analyse statistique afin d’appréhender leur variabilité et de dégager des caractères différentiels entre SyE. L’outil statistique le mieux adapté est l’analyse canonique des correspondances (ACC) : cette technique d’ordination sous contrainte traite simultanément deux matrices de relevés (la matrice « espèces » et la matrice « environnement »), dans le but de déterminer la part de chaque facteur explicatif dans la variation floristique.
6.9. Interprétation des syntaxons élémentaires et délimitation des associations
Le syntaxon élémentaire n'est pas l'unité élémentaire de la phytosociologie
L’unité élémentaire de la phytosociologie est l’association (rappel : unité abstraite fondamentale de la classification hiérarchique des individus d’association, constituée de un ou plusieurs syntaxons élémentaires partageant significativement plus de caractères communs que de caractères différentiels ; les caractères floristiques sont prioritaires).
Il faut cependant admettre que l’association végétale résulte d’une interprétation personnelle et qu’elle demeure une entité à définition arbitraire.
De Foucault (1984)
« mon inquiétude de phytosociologue est d’être le seul à reconnaître l’ensemble des êtres phytosociologiques que j’ai décrits ou que je vais décrire dans ce mémoire ; elle se dissipera lorsque d’autres chercheurs auront reconnu, sans mon intervention, ce que j’ai vu et dès lors “mes” associations seront devenues des êtres objectifs parce que transmissibles »
6.10. Description d’une association végétale
Les associations végétales sont décrites par un tableau phytosociologique élaboré accompagné d’un commentaire ; ce tableau, regroupant la plupart du temps plusieurs syntaxons élémentaires, n’est pas homotone.
Présentation du tableau élaboré :
- les taxons en ligne, les relevés en colonne ; aux intersections lignes-colonnes figurent les coefficients d’abondance-dominance (éventuellement d’agrégation) de l’espèce dans le relevé correspondant ;
- l’en-tête doit indiquer au minimum :
- un identifiant du relevé renvoyant à une liste permettant la localisation spatio-temporelle (date, lieu le plus précis possible) et l’identification de l’auteur du relevé ;
- la surface (en m²) ;
- le recouvrement de la végétation en %, détaillé pour chaque strate ;
- le nombre d’espèces dans chaque relevé ;
- des renseignements complémentaires peuvent y être portés : hauteur des différentes strates, profondeur de la lame d’eau (relevés aquatiques), altitude, pente, exposition ;
- la dernière colonne, dite colonne synthétique ou colonne romaine, indique la classe de fréquence de chaque espèce dans le tableau, de I à V :
| Classe | Fréquence |
|---|---|
| I | 1 à 20 % |
| II | 21 à 40 % |
| III | 41 à 60 % |
| IV | 61 à 80 % |
| V | 81 à 100 % |
Si le nombre de relevés composant le tableau est inférieur à 5, on porte directement le nombre de présences de l’espèce dans le tableau.
Classement des espèces par affinités sociologiques (dans l’ordre suivant) :
- combinaison caractéristique de l’association ;
- espèces différentielles de variation (le cas échéant) ;
- espèces caractéristiques de l’alliance, de l’ordre et de la classe de l’association ;
- autres espèces classées par appartenance phytosociologique, de la plus représentée à la moins représentée ;
- autres espèces : espèces non rattachées à une classe phytosociologique ;
- les espèces présentes une seule fois sont placées dans une liste annexe dite d’espèces accidentelles.
Exemple de tableau élaboré - relevés de pelouse à Sesleria caerulea (combinaison caractéristique et espèces du Mesobromion erecti, des Brometalia erecti, des Festuco valesiacae-Brometea erecti et des Trifolio medii-Geranietea sanguinei) :
| Taxon | R1 | R2 | R3 | R4 | R5 | Cl. |
|---|---|---|---|---|---|---|
| surface h1 (m2) | 25 | 40 | 30 | 25 | 50 | |
| % recouvr. h1 | 95 | 90 | 80 | - | 85 | |
| nb taxons | 30 | 28 | 34 | 36 | 36 | |
| Combinaison caractéristique | ||||||
| Sesleria caerulea | 4 | 4 | 1 | 3 | 3 | V |
| Carex ornithopoda | 1 | . | 2 | 1 | 1 | IV |
| Carduus defloratus | . | 1 | . | + | + | III |
| Leucanthemum adustum | . | + | . | + | + | III |
| Epipactis atrorubens (dif.) | . | . | + | 1 | 1 | III |
| Espèces du Mesobromion erecti | ||||||
| Euphorbia flavicoma subsp. verrucosa | 1 | 1 | . | 2 | 2 | IV |
| Carex flacca subsp. flacca | 1 | . | 1 | + | + | IV |
| Lotus corniculatus subsp. corniculatus | + | . | 1 | + | + | IV |
| Briza media | + | + | . | + | + | IV |
| Festuca lemanii | + | . | . | 1 | 1 | III |
| Gymnadenia conopsea subsp. conopsea | . | . | 1 | + | + | III |
| Leontodon hispidus subsp. hispidus | . | + | . | + | + | III |
| Helianthemum nummularium subsp. obscurum | . | 1 | . | . | 1 | II |
| Trifolium montanum subsp. montanum | + | 1 | . | . | . | II |
| Carex caryophyllea | . | . | . | + | + | II |
| Centaurea pannonica | . | + | . | + | . | II |
| Orchis militaris | + | . | + | . | . | II |
| Plantago media | . | . | . | + | + | II |
| Espèces des Brometalia erecti | ||||||
| Asperula cynanchica | . | + | 2 | 1 | 1 | IV |
| Hippocrepis comosa | . | + | 2 | 1 | + | IV |
| Bromus erectus | . | . | . | 1 | 1 | II |
| Galium pumilum | . | . | . | + | + | II |
| Espèces des Festuco valesiacae - Brometea erecti | ||||||
| Pimpinella saxifraga subsp. saxifraga | + | + | 1 | + | + | V |
| Sanguisorba minor | . | 2 | + | 1 | 1 | IV |
| Euphorbia cyparissias | . | . | + | 1 | 1 | III |
| Carlina vulgaris subsp. vulgaris | . | . | + | + | + | III |
| Festuca longifolia subsp. pseudocostei | . | 1 | 1 | . | . | II |
| Teucrium chamaedrys subsp. germanicum | . | 1 | + | . | . | II |
| Espèces des Trifolio medii - Geranietea sanguinei | ||||||
| Brachypodium pinnatum | 1 | . | 2 | + | + | IV |
| Anthericum ramosum | 1 | . | . | 3 | 3 | III |
| Viola hirta | + | . | . | 1 | 3 | III |
| Origanum vulgare | . | . | 1 | + | + | III |
| Galium mollugo subsp. erectum | . | + | 1 | . | . | II |
| Hypericum montanum | . | . | . | + | + | II |
| Autres taxons | ||||||
| Campanula rotundifolia | + | + | 1 | + | + | V |
| Scabiosa lucida | 1 | . | 1 | 1 | 1 | IV |
| Hieracium semisilvaticum | + | . | 2 | + | + | IV |
| Solidago virgaurea subsp. virgaurea | 1 | . | + | + | + | IV |
| Succisa pratensis | + | . | . | + | + | III |
| Polygala amarella | . | . | . | + | + | II |
Ce tableau ne se suffit pas à lui-même et il doit être accompagné d’un commentaire portant sur :
| Rubrique | Contenu |
|---|---|
| Synfloristique | commentaire de la liste des espèces caractéristiques, différentielles positives et négatives par rapport aux associations voisines ; conclusion sur le statut phytosociologique du groupement (rapport à une association déjà décrite, variation d’une association connue, association nouvelle, ou groupement provisoire) |
| Physionomie | espèces dominantes, stratification, formes biologiques |
| Synécologie | climatologie, type de sol, dynamique hydrique, influences biotiques des animaux et de l’homme |
| Syndynamique | influence du temps sur le groupement végétal, contacts avec les autres groupements |
| Synchorologie | répartition géographique de l’association |
| Synsystématique | place de l’association dans le synsystème |
7. Deuxième étape synthétique - le synsystème
7.1. Principes
- Cette démarche n’a de sens que dans le cadre d’une synthèse portant sur un vaste territoire ;
- l’analyse d’un très grand nombre de données aboutit à l’élaboration d’un synsystème : un système regroupant un ensemble d’unités hiérarchiques emboîtées les unes dans les autres, chacune différenciée des autres par quelques espèces ;
- à partir d’un tableau brut construit à partir des colonnes synthétiques de chaque syntaxon, on met en évidence la hiérarchie synsystématique par permutation successive des lignes et des colonnes ; la construction est ascendante, en partant des associations ; il est également possible d’utiliser des méthodes statistiques ;
- la liste des espèces caractéristiques et différentielles des différentes unités est lue directement sur le tableau ;
- depuis J. Braun-Blanquet, quatre niveaux hiérarchiques principaux sont retenus : l’association, l’alliance, l’ordre et la classe ; quatre niveaux intermédiaires ont été introduits par la suite : la sous-alliance, le sous-ordre, la sous-classe et la sous-association.
Le suffixe du nom d’une unité permet d’identifier son niveau hiérarchique :
| Niveau | Suffixe | Exemple |
|---|---|---|
| Classe | -etea | Festuco-Brometea |
| Sous-classe | -enea | Nardenea strictae (inusité de nos jours) |
| Ordre | -etalia | Brometalia erecti |
| Sous-ordre | -enalia | Carpino betuli-Fagenalia sylvaticae |
| Alliance | -ion | Mesobromion erecti |
| Sous-alliance | -enion | Tetragonolobo maritimi-Mesobromenion erecti |
| Association | -etum | Gentiano vernae-Brometum |
| Sous-association | -etosum | Senecio aquatici-Oenanthetum mediae caricetosum distichae |
7.2. Les référentiels
- Le référentiel actuellement proposé pour la France est CatVeg (2024). Il référence tous les syntaxons de France avec la chorologie départementale des alliances. ➡️ Lafon et al. - 2024 - CatVeg - Catalogue de la végétation de France métropolitaine.pdf
- Il existe également un Prodrome des végétations de France allant jusqu’au alliance et encore en cours de déclinaison au niveau des associations via le Prodrome des végétations de France 2. Comme CatVeg, le Prodrome référence les syntaxons de France, mais il accompagne également ces derniers d’une description contenant la synécologie et les espèces caractéristiques. ➡️ Bardat et al. - 2001 - PRODROME DES VÉGÉTATIONS DE FRANCE.pdf et Roux et al. - 2024 - Prodrome des végétations de France 2.pdf
7.3. Rôle des synsystèmes (De Foucault, 1984)
À l’instar d’une théorie physique, le synsystème est :
- d’abord une classification hiérarchique des lois (relation de cause à effet entre un syntaxon et ses conditions écologiques) ;
- il permet une reconnaissance des lois, en permettant de décider si un syntaxon est déjà connu ou non ;
- lorsqu’il est stabilisé, il permet d’élaborer des clefs de détermination des groupements végétaux ;
- il permet la prévision de lois inconnues, comme en physique ou en chimie.
7.4. La prévision en phytosociologie
Exemple fondateur - le tableau périodique des éléments : la première version, incomplète car tous les éléments n’étaient pas encore connus, a été créée par le Russe Dimitri Ivanovich Mendeleïev en 1869. Remarquant que certaines propriétés variaient de manière périodique avec la masse atomique, il classa les éléments sur cinq colonnes de dix-huit éléments, en laissant des cases vides, prévoyant que d’autres éléments seraient découverts plus tard.
De Foucault a mis en évidence trois niveaux de prévision en phytosociologie :
- Au niveau du relevé de végétation : l’existence d’une association végétale est conditionnée par la répétitivité de sa combinaison floristique. La réalisation de plusieurs relevés d’un même syntaxon permet de prévoir l’apparition, dans la liste floristique d’un nouveau relevé, d’une ou plusieurs espèces significatives du syntaxon ;
- Au niveau du paysage : en parcourant une région naturelle nouvelle correspondant à un paysage déjà connu et déjà étudié, on peut y prévoir l’existence d’un certain nombre d’associations liées à ce paysage, et même anticiper sur leur agencement ;
- Prévision d’associations inconnues déduites du synsystème : ces deux premiers niveaux de prédiction sont une conséquence du déterminisme (principe de causalité : dans les mêmes conditions, les mêmes causes produisent les mêmes effets). Le troisième niveau concerne les associations inconnues. Exemple : dans sa thèse, de Foucault (1984) décrit le Lobelio urentis-Agrostietum caninae, association thermo-atlantique, qui entre en contact ou en superposition avec des groupements thérophytiques du Cicendion filiformis. Or les groupements du Cicendion sont présents en dehors du domaine thermo-atlantique, notamment dans le sub-atlantique, où certaines espèces composant le Lobelio urentis-Agrostietum caninae ne pénètrent pas. De Foucault prévoit alors l’existence d’un syntaxon vicariant, essentiellement défini par l’absence des espèces atlantiques, et confirme effectivement sa théorie en décrivant le Carici demissae-Agrostietum caninae dans quelques sites du nord de la France.
Le tableau « à la Mendeleïev »
La présentation des données d’une région sous forme d’un tableau rappelant celui de Mendeleïev permet de prévoir l’existence de syntaxons non décrits.
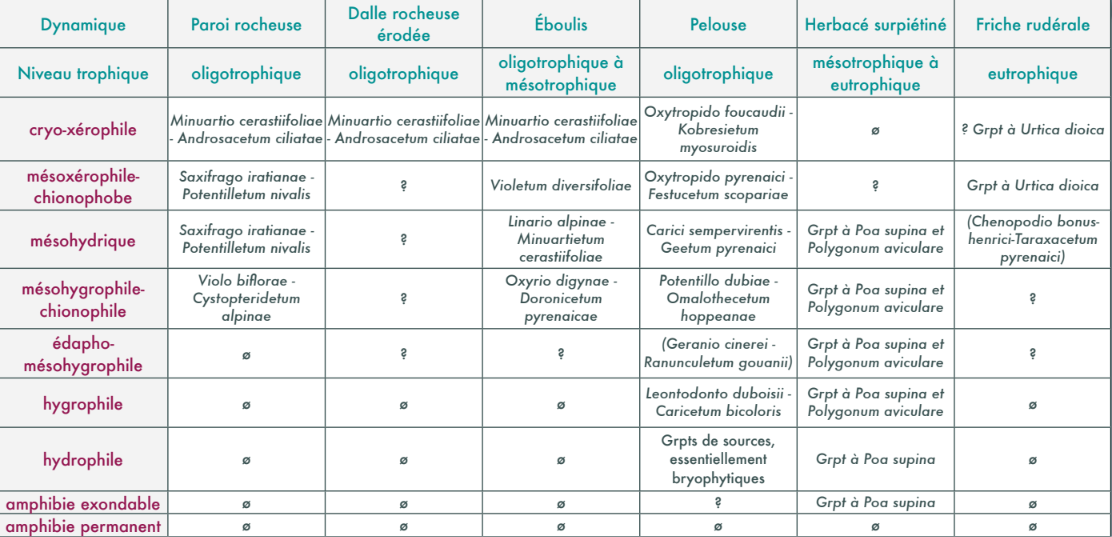
7.5. Nomenclature des syntaxons
Pour pouvoir nommer les syntaxons, il est indispensable de se référer aux résultats publiés antérieurement pour rechercher s’ils ont déjà été décrits et nommés :
- si c’est le cas, et si les conceptions sont compatibles, il suffit de reprendre les noms préalablement créés, qui précisent s’il s’agit d’associations ou de subdivisions de celles-ci ;
- dans le cas contraire, on propose un nouveau nom de syntaxon de rang déterminé (association, sous-association ou variante) pour chaque syntaxon élémentaire nouvellement créé.
La nomenclature suit des règles précises regroupées dans le Code International de Nomenclature Phytosociologique (CINP), dont la version la plus récente est celle de Teurillat et al. (2021) - Theurillat et al. - 2021 - International Code of Phytosociological Nomenclature. 4th edition.pdf
La création d’un syntaxon et/ou la validation d’un syntaxon existant impliquent :
- une publication effective (Art. 1) - depuis le 1er janvier 2021, par diffusion d’un document imprimé (presse, offset) ou d’une publication électronique en format PDF portant un ISBN, un ISSN ou un DOI. Si la publication n’est pas effective (thèse, rapport d’expertise non diffusés, etc.), le nom du syntaxon est un nomen ineditum (Art. 1, Note 3) ;
- la formation du nom selon les règles du CINP / ICPN (Teurillat et al., 2021 ; Arts. 3d à 3i, 10 à 14) ;
- l’élaboration d’une diagnose suffisante (Art. 2b) - définie par des règles spécifiques selon le rang auquel le syntaxon est placé (Art. 7 pour les associations et sous-associations, Arts. 8 et 9 pour les autres rangs), sinon il s’agit d’un nomen nudum (Arts. 2b et 7) ;
- la désignation codifiée d’un type nomenclatural (Art. 5) - depuis le 1er janvier 2002, le mot latin typus doit être utilisé (holotypus, lectotypus, neotypus) ; depuis le 1er janvier 2021, même lorsqu’un seul élément figure dans la diagnose originale, le terme holotypus doit être employé pour un nouveau syntaxon, et neotypus hoc loco pour un néotype.
Validations et mentions :
- pour les syntaxons publiés avant certaines versions de l’ICPN (1979, 2002, 2021), des aménagements sont prévus (Arts. 1, 3o, 5) pour les considérer comme valides. Cependant, certains sont illégitimes (nomen illegitimum, abrégé nom. illeg. en application des articles 29 à 34) et d’autres non valides (nomen invalidum, abrégé nom. inval. en application de l’article 2, paragraphes a, c ou d, ainsi que des articles 3 et 4). L’ICPN permet de les valider dans une nouvelle publication (Art. 6) - procédure notamment utilisée à de nombreuses reprises par Royer et al. (2006). La validation est effectuée par la publication effective du nom correct et des dispositions manquantes, accompagnée d’une référence univoque à la publication originale (Art. 6, Note 2) ;
- les syntaxons validés ou nouveaux doivent obligatoirement être suivis de la mention nov. hoc. loco. (ass. nov. hoc. loco., all. nov. hoc. loco., etc.), signifiant « nouveau dans cette publication » (Art. 3i, Recommandation 3i) ;
- dans le cas d’un syntaxon nouveau, un holotype doit être désigné dans la publication (Art. 5a) - depuis le 1er janvier 2021, même si un seul relevé figure dans la diagnose originale, il doit être indiqué comme holotypus ;
- dans le cas de la validation d’un syntaxon publié antérieurement avec son rang mais non validé (par exemple en raison d’une diagnose insuffisante ou de l’absence d’un type), un lectotype ou un néotype doit être désigné (Arts. 5 et 6) ; le nom du syntaxon est alors suivi du nom du ou des auteurs, puis de « ex », puis du ou des auteurs de la publication (Recommandation 46D) ; depuis le 1er janvier 2021, la désignation d’un néotype doit utiliser la formule neotypus hoc loco.
8. Traitement statistique des données
Introduction d'après le CBNFC (2009) révisée
Cette section n’est qu’un aperçu théorique complété dans la section Analyses et rattachement.
Trois cas d’usage - le phytosociologue peut être amené à réaliser des traitements statistiques pour :
- établir une typologie ;
- analyser des gradients floristiques ;
- analyser des gradients écologiques.
À chaque cas correspond une méthode particulière d’analyse multivariée.
Objets et descripteurs :
- objets = observations (relevés) ;
- descripteurs = variables observées ou mesurées : variables biologiques (espèces ou leurs attributs, mesures d’abondance et de dominance), variables environnementales (température, pH, type de sol…), variables spatiales (coordonnées géographiques).
Le complexe des données écologiques - chaque objet est décrit par plusieurs descripteurs (multidimensionnalité). La représentation graphique directe est impossible au-delà de 3 dimensions. Les buts des analyses multivariées sont de réduire la dimensionnalité des données et de dégager les grandes tendances de leur variation (gradients, groupes) pour les rendre interprétables.
Deux finalités : exploration de la structure des données (approche descriptive) ou modélisation statistique (approche explicative).
Les méthodes multivariées :
| Finalité | Recherche de discontinuités | Recherche de gradients |
|---|---|---|
| Approche descriptive | groupement (clustering) | ordination |
| Approche explicative | arbres de classification et de régression | ordination canonique ; tests d’hypothèses (test de Mantel) |
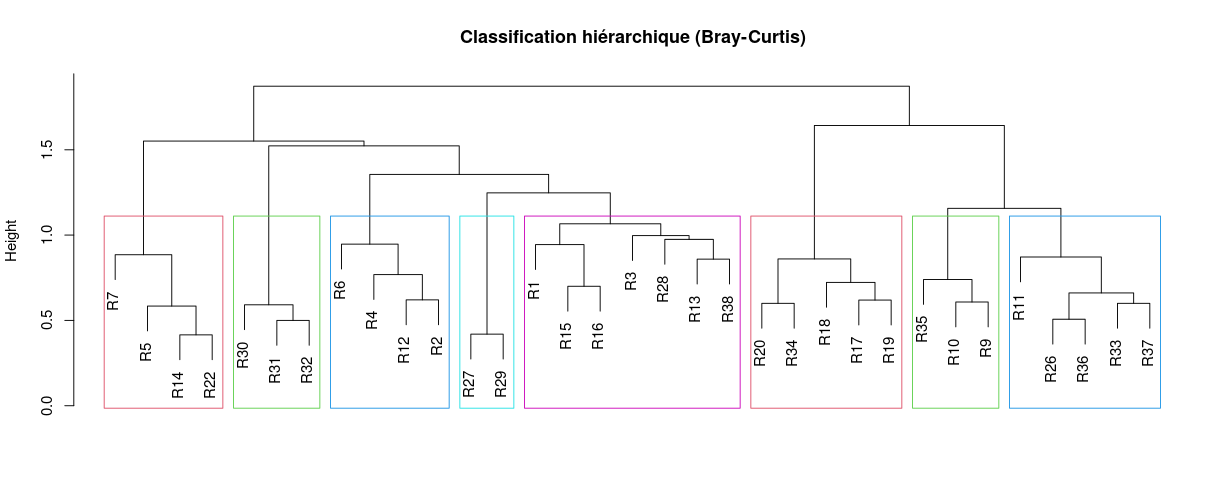 |
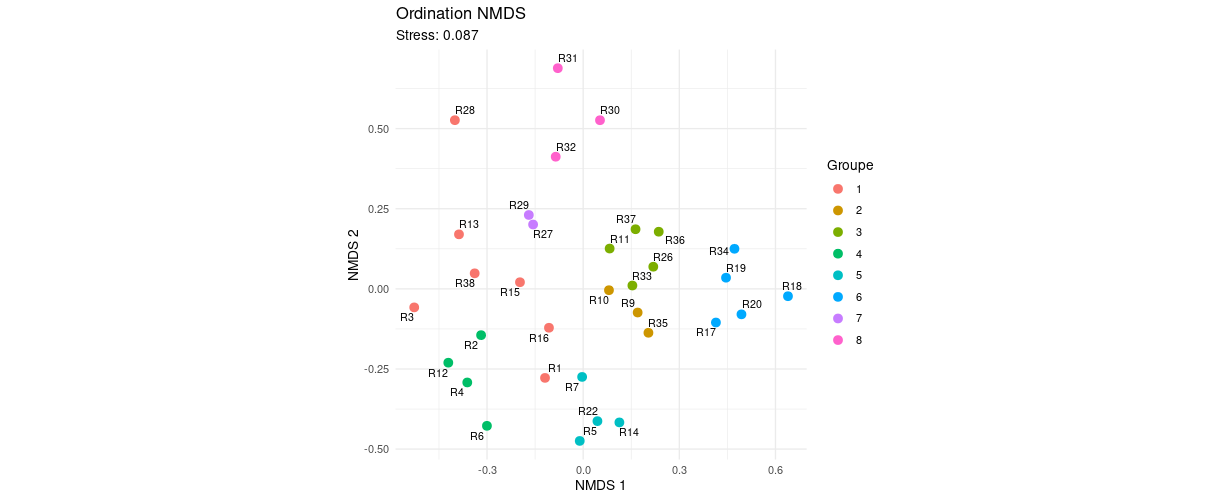 Graphiques issues de PhytoCohortis
Types de descripteurs
- binaires (ex. présence 1/absence 0) ;
- multiples
- non ordonnés (ex. type de sol, exposition) ;
- ordonnés :
- semi-quantitatifs (ordinaux) ex. faible-moyen-fort ; codes de dominance r + 1 2 3 4 5) ;
- quantitatifs (cardinaux)
- discrets (ex. nombre d’individus) ;
- continus (ex. biomasse, altitude) ;
- synthétiques (ex. fréquence relative, rapport C/N).
Représentation matricielle - matrice de données Yₙₚ :
- n vecteurs objets en lignes,
- p vecteurs descripteurs en colonnes ;
les données sont généralement réparties en 3 matrices :
- matrice « espèces » Yₙₚ ;
- matrice « environnement » Xₙₚ’ ;
- matrice « spatiale » Zₙₚ
les objets (lignes) sont communs aux trois matrices (même dimension, même ordre, mêmes étiquettes).
Codage des données - les données qualitatives doivent être codées pour être traitées : ex. variable qualitative multiclasse en plusieurs variables binaires (dummy variables) ; une des variables binaires peut être éliminée (4 modalités → 3 variables indépendantes).
Transformations des données - les données doivent, la plupart du temps, être transformées pour être compatibles avec les traitements statistiques :
- rendre quantitatifs des descripteurs semi-quantitatifs : transformation des codes de dominance en recouvrements moyens ;
- rendre comparables des descripteurs mesurés dans des unités différentes (standardisation des vecteurs descripteurs) : ranging (valeurs entre 0 et 1, ou −1 et 1), centering (moyenne = 0), scaling (réduction), standardization (centrage + réduction : moyenne = 0, écart-type = 1) ;
- améliorer la distribution des descripteurs : transformation par la racine carrée, par le logarithme, par l’arcsinus (proportions) ;
- rendre comparables des objets dont les descripteurs ont des valeurs très différentes : transformation des abondances, recouvrements ou fréquences absolus en valeurs relatives (proportions par objet : somme par relevé = 1) ; normalisation des vecteurs objets (norme de chaque vecteur ajustée à 1).
8.1. Analyse des discontinuités : les techniques de groupement
- Groupement (clustering) = recherche de discontinuités dans la matrice de données (méthode non supervisée) : tri et partitionnement des objets ou des descripteurs en groupes ;
- en écologie, les groupes sont généralement flous (multiples gradients, variation continue) ; démarche heuristique (découverte de structures, class discovery) ; la typologie identifie un nombre défini de types ; la classification hiérarchique représente les affinités par un dendrogramme ;
- critère de ressemblance : les méthodes se basent presque toujours sur une matrice d’association - (dis)similarité ou distance entre objets (mode Q) ou dépendance entre descripteurs (mode R) ;
- mesures d’association : indices de similarité (bornés entre 0 et 1 ; 1 pour deux objets identiques), de dissimilarité (bornés entre 0 et 1 ; 0 pour deux objets identiques), de distance (pas de borne supérieure ; 0 pour deux objets identiques) ; un indice de similarité se convertit simplement en dissimilarité, et réciproquement ;
- critère de décision : la plupart des méthodes considèrent des groupes mutuellement exclusifs (partition hard ou crisp) ; alternative : la théorie des ensembles flous (fuzzy sets), où chaque objet se voit attribuer une probabilité d’appartenance à chaque groupe (fuzzy partition) ;
- algorithmes : groupement non hiérarchique (partition ; nombre de groupes fixé au départ) ; groupement hiérarchique (les groupes de rang inférieur se regroupent dans des groupes de rang supérieur) construit par agglomération (classification hiérarchique ascendante : de n groupes à 1) ou par division (descendante : de 1 groupe à n) ; le nombre de groupes dépend du choix d’un niveau de coupure ;
- principales méthodes hiérarchiques : liens simples (la distance entre deux groupes est la plus petite dissimilarité ; enchaînement des objets selon l’ordre des distances), liens complets (la plus grande dissimilarité), association moyenne (UPGMA - Unweighted Pair-Group Method using Arithmetic averages), modèle général de Lance et Williams, méthode de Ward - la méthode qui semble donner les meilleurs résultats en typologie phytosociologique ;
- méthode de Ward : minimise la variance à l’intérieur des groupes ; à chaque étape, l’algorithme recherche la paire d’objets ou de groupes dont la fusion augmente le moins possible la somme des carrés des distances entre objets et centroïdes des groupes ; méthode élégante et robuste, mais supposant théoriquement une mesure d’association métrique et euclidienne - d’où l’usage d’une matrice d’association avec un indice de distance de corde (bornée, métrique, asymétrique - ne tenant pas compte des doubles zéros - et euclidienne ; racine carrée de la somme des carrés des différences après normalisation des vecteurs objets) ; elle tend à produire des dendrogrammes avec des groupes compacts de taille égale ;
- interprétation d’un dendrogramme (CAH) : l’ordre des objets ne doit pas être utilisé pour interpréter les ressemblances (un dendrogramme peut être assimilé à un mobile dont les branches peuvent pivoter autour des nœuds) ; pour le choix du niveau de coupure : pas de méthode objective - critère empirique : couper les branches les plus longues, rien n’oblige à couper à un même niveau ; le critère prépondérant est la possibilité d’interprétation biologique ou écologique des groupes obtenus ; le graphe des niveaux de fusion (représentation de k, nombre de groupes, en fonction de h, niveau de fusion) aide à décider du niveau de coupure (segment le plus long) ;
- distance euclidienne : racine carrée de la somme des carrés des différences entre les valeurs des descripteurs ; pas de borne supérieure, dépend de l’échelle des variables (à calculer de préférence après standardisation des descripteurs) ; métrique et symétrique ; utilisée dans l’analyse en composantes principales.
8.2. Analyse des gradients : techniques d’ordination en espace réduit
-
Principe : transposer un nuage de points-objets, situés dans l’espace initial des descripteurs, dans un sous-espace où les ressemblances entre objets sont représentées sur un petit nombre d’axes hiérarchisés : axes orthogonaux, indépendants, variance maximale sur le premier axe et décroissant selon la hiérarchie des axes ; l’espace réduit est projeté sur un plan en choisissant 2 axes - l’examen du plan 1×2 puis du plan 1×3 peut révéler un troisième groupe distinct ;
-
les différentes méthodes : analyse en composantes principales (ACP/PCA), analyse factorielle des correspondances (AFC/CA), analyse en coordonnées principales (ACoP/PCoA), cadrage non métrique multidimensionnel (NMDS, méthode non paramétrique) ;
-
AFC : variante de l’ACP s’appliquant à un tableau de contingence ; descripteurs de même nature (dimensionnellement homogènes) ; valeurs négatives et vecteurs nuls non supportés ; préserve dans l’espace réduit la distance du chi² ; particulièrement bien adaptée aux données espèces en présence-absence ou en recouvrements ; ne tient pas compte des doubles zéros ; suit un modèle unimodal correspondant aux courbes de réponse des organismes le long d’un gradient ; on cherche à construire les variables latentes (axes ou facteurs) qui expliquent le mieux les descripteurs (espèces) ;
-
interprétation d’une AFC : les proximités entre objets, entre descripteurs, et entre objets et descripteurs s’interprètent en termes de ressemblance ou d’association mutuelle ; la projection des descripteurs sur les axes s’interprète comme leur optimum le long des axes écologiques latents ; les points loin de l’origine sont les plus clairement reliés aux axes ; près de l’origine : distribution unimodale à optimum central, distribution bimodale, ou points non reliés aux axes examinés ; les axes s’interprètent a posteriori en termes de facteur écologique (ou de combinaison de facteurs) ;
-
effet Guttman : lorsque les données présentent une structure nettement en gradient, les objets et descripteurs tendent à former une parabole sur le plan réduit et les axes tendent à être compressés vers les extrémités - ce qui peut fausser l’interprétation en rapprochant des points (interprétation en termes de ressemblance) pourtant situés aux extrémités du gradient ;
 Parabole de l’effet Guttman
-
application aux données phytosociologiques : l’AFC est très sensible aux espèces peu fréquentes (problème d’agglutination : compression du nuage de points sur les axes principaux) - supprimer les espèces « rares » (présentes 1, 2, 3… fois) pour mieux représenter les gradients principaux ; la somme des valeurs propres représente l’inertie totale de la matrice de données - elle ne doit être ni trop faible ni trop élevée (transformer les recouvrements par la racine carrée, coder en présence-absence 1-0, éliminer les espèces « rares » ou les relevés excentriques) ; examiner au moins les plans 1×2 et 1×3 en tenant compte du % de variance représenté ; imposer la même échelle sur les deux axes d’un graphe d’ordination et préciser si cette échelle est différente pour la double projection des objets et des descripteurs ; affiner l’interprétation du plan réduit en superposant le résultat d’un groupement.
9. Bibliographie
- Allorge P. (1922, Vexin) ; Malcuit (1928, Vosges) ; Rallet (1935, Brenne) ; Lemée (1937, Perche) ; Jovet (1949, Valois) - Monographies de l’école parisienne
- Bardat J. et al. (2001) - Prodrome des végétations de France
- Barkman et al. (1964) ; Westhoff V. & Van Der Maarel E. (1978) ; Theurillat J.-P. (1992) - Subdivisions de l’indice 2
- Barkman J. J. (1968) ; Gounot M. (1969) - Critiques de l’aire minimale
- Braun-Blanquet J. & Pavillard J. (1922) - « Vocabulaire de Sociologie Végétale »
- Braun-Blanquet J. & Pavillard J. (1928) - Aire minimale
- Brockmann-Jerosch H. & Rübel E. (1910) ; Diels L. (1912) ; Ellenberg H. & Mueller-Dombois D. (1967) - Typologies des formations végétales
- De Foucault B. (1984) - Cadre conceptuel, loi phytosociologique, citation
- De Foucault B. (1986) - Définition du syntaxon élémentaire
- Delassus, L. (2015). Guide de terrain pour la réalisation des relevés phytosociologiques. Delassus - 2015 - Guide de terrain.pdf
- Dufour, S., et H. Piégay (2004). Guide de gestion des forêt riveraine de cours d’eau.
- Duvigneaud P. (1946) ; Emberger L. (1897-1969) ; Daget P. (1964) ; Godron M. (1967) ; Gounot M. (1969) - Phytoécologie
- Ellenberg H. et al. (1977) ; Landolt E. (1991) - Valeurs écologiques des espèces
- Francius, Eric. (2019) - Inventaire floristico-sociologique de la flore arvale et rudérale du Centre Inra Antilles Guyane
- Gillet F. - « Analyse des données phytosociologiques », laboratoire des systèmes écologiques (ECOS), École polytechnique fédérale de Lausanne
- Gillet F., de Foucault B. & Julve Ph. (1991) ; Lippmaa T. (1892-1943) - École synusiale intégrée
- Gillet F., de Foucault B. & Julve Ph. (1991) ; Gillet F. (1998) - Définition de l’association, aire minimale, homotonité
- Gillet, François. (2000) - La Phytosociologie synusiale intégrée. Guide méthodologique - La_Phytosociologie_synusiale_integree_Guide_method.pdf
- Grisebach A. (1814-1879) - Concept de formation végétale
- Guinochet M. (1909-1997) ; Tüxen R. (1899-1980) - École sigmatiste
- Guinochet M. (1973) - Définition de l’association
- Humboldt A. de (1769-1859) - Étages de végétation, zonation, formes de croissance
- Kuhnholtz-Lordat G. - École « ethnophytosociologique »
- Lecoq H. (1802-1871) ; Flahaut C. (1852-1935) - Précurseurs
- Marage D., Gégout J.-P. - Modélisation de l’évolution de la végétation
- Meddour R. (2011) - La méthode phytosociologique sigmatiste ou Braun-blanqueto-tüxenienne
- Oksanen (package vegan), Chessel (package ade4) - R ; Ter Braak - CANOCO ; Legendre - Progiciel R 4.0d6
- Paczoski J. (1864-1942) - Création du terme « phytosociologie »
- Pavillard J. (1927) - Définition de l’association
- Raunkiaer C. (1934) - Histogramme des classes de fréquences
- Rivas Goday S. (1905-1981) ; Géhu J.-M. ; Rivas-Martinez S. ; Hegg O. ; Béguin C. (1975) - Symphytosociologie
- Rivas-Martinez S. (1996) - Définition de la formation végétale
- Royer J.-M. et al. (2006) - Synopsis commenté des groupements végétaux de la Bourgogne et de la Champagne-Ardenne
- Theurillat, Jean-Paul, Wolfgang Willner, Federico Fernández-González, Helga Bültmann, Andraž Čarni, Daniela Gigante, Ladislav Mucina & Heinrich Weber (2021) - « International Code of Phytosociological Nomenclature. 4th Edition », Applied Vegetation Science 24(1):e12491. doi: avsc.12491 - Theurillat et al. - 2021 - International Code of Phytosociological Nomenclature. 4th edition.pdf
- Tüxen R. et al. (1977) ; Klement (1941) - Quotient de saturation ; indice d’hétérogénéité
- Weber H. E., Moravec J. & Theurillat J.-P. (2000) - Code International de Nomenclature Phytosociologique (CINP)